Lipopolysaccharide로 유도된 RAW264.7 대식세포에서 개똥쑥 에탄올 추출물의 항염증 효과
ⓒ 2026, Korean Association of Human Ecology. All rights reserved.
Abstract
This study investigated the anti-inflammatory properties of an ethanol extract of Artemisia annua (AE) and its underlying molecular mechanisms in LPS-stimulated RAW264.7 macrophages. AE demonstrated no significant cytotoxicity at concentrations up to 200 μg/mL. The Griess assay showed that AE significantly and dose-dependently suppressed LPS-induced nitric oxide (NO) production, with notable inhibition at 100 and 200 μg/mL. Quantitative real-time PCR (qRT-PCR) analysis revealed that AE dose-dependently attenuated the mRNA expression of iNOS and interleukin-6 (IL-6). While the mRNA levels of cyclooxygenase-2 (COX-2), interleukin-1β (IL-1β), and tumor necrosis factor-α (TNF-α) also decreased, this trend was not statistically significant. Western blot analysis further indicated that AE selectively inhibited the phosphorylation of extracellular signal-regulated kinase (ERK) in a concentration-dependent manner, and also showed a tendency to reduce p38 mitogen-activated protein kinase (p38 MAPK) phosphorylation, without significantly affecting c-Jun N-terminal kinase (JNK) signaling. These findings suggest that AE exerts its anti-inflammatory effects primarily through an ERK-mediated pathway, alongside a non-significant reduction in p38 phosphorylation. This leads to the downregulation of iNOS and COX-2 expression and subsequent inhibition of excessive NO production. Collectively, these in vitro results indicate that AE holds promise as a natural functional ingredient with anti-inflammatory potential.
Keywords:
Artemisia annua, Inflammation, RAW264.7 cell, Extracellular signal-regulated kinase, Nitric oxide키워드:
개똥쑥, 염증, RAW264.7 세포, 세포외신호조절키나아제(ERK), 산화질소Ⅰ. 서론
염증(inflammation)은 심혈관 질환, 대사증후군, 신경퇴행성 질환 등 현대 주요 질병의 공통된 병리학적 기전으로, 전 세계적으로 질병 부담의 주요 원인이 되고 있다. 염증 반응은 본래 병원체 침입이나 조직 손상에 대한 생체 방어기전이지만, 이러한 반응이 과도하거나 지속될 경우 정상 조직의 손상과 기능 장애를 초래한다(Nathan, 2002). 선천 면역계의 핵심 구성 세포인 대식세포(macrophage)는 전신 조직에 걸쳐 광범위하게 존재하며, 외부 병원성 자극에 대한 1차적 방어 기능을 수행한다(Hirayama et al., 2018). 대식세포는 LPS와 같은 염증 유발 인자에 노출되면 tumor necrosis factor-α(TNF-α), interleukin-1β(IL-1β), interleukin-6(IL-6), Nitric Oxide(NO) 등 다양한 염증 매개물질을 생성·분비함으로써 염증 반응을 더욱 촉진시키는 것으로 알려져 있다(Sugiyama et al., 2018). 특히 iNOS에 의해 생성되는 NO는 염증 반응의 주요 매개자로 작용하며, 과도한 NO 생성은 조직 손상과 염증성 질환의 진행에 기여한다(Wang et al., 2020).
이러한 염증성 유전자의 발현은 복잡한 세포 내 신호전달 체계에 의해 정교하게 조절된다. 그 중 mitogen-activated protein kinase(MAPK) 신호전달 경로는 세포표면 수용체로부터 핵까지 신호를 전달하는 핵심 축으로, 염증 반응의 강도와 지속 시간을 결정하는 중요한 조절점이다. MAPK 계열은 extracellular signal-regulated kinase(ERK), p38 mitogen-activated protein kinase(p38), c-Jun N-terminal kinase(JNK)의 세 가지 주요 경로로 구성되며, 각각 독립적이면서도 상호 연관된 방식으로 염증반응을 조절한다(Kyriakis & Avruch, 2012). 이들의 인산화 활성화는 전사인자의 조절을 통해 inducible nitric oxide synthase(iNOS) 및 cyclooxygenase-2(COX-2)와 같은 염증 관련 효소의 발현을 유도한다(Oh & Hyun, 2025). 따라서 효과적인 항염증 물질은 염증성 사이토카인의 발현 억제뿐 아니라, 관련 상위 신호전달 경로의 조절 가능성도 함께 고려될 필요가 있다(Wang et al., 2024).
개똥쑥(Artemisia annua)은 전통적으로 한의학에서 “청호(靑蒿)”로 불리며 해열 및 항염 목적으로 사용되어 온 약용 식물로, artemisinin을 비롯한 다양한 terpenoid와 flavonoid 성분을 함유하고 있다(홍민지 외, 2021). 선행연구에 따르면 이들 성분은 항암(김보민 외, 2016; Efferth, 2017), 항산화(류지현 외, 2011; Cai et al., 2004), 항비만(Hwang et al., 2016), 항균(Donato et al., 2015) 활성을 나타내는 것으로 보고되었다. 나아가 항말라리아제로서의 개발 가능성이 제시된 바 있으며(World Health Organization, 2006), 2019년 중국 우한에서 최초 발병하여 전 세계적 팬데믹을 초래한 코로나바이러스감염증-19(COVID-19)의 치료를 위한 민속생물의약(ethnopharmacotherapeutic drug)으로도 주목받고 있다(Adhikari et al., 2021; Haq et al., 2020; Hong, 2024). 최근에는 개똥쑥의 유효성분으로 세스퀴테르펜 락톤계 화합물인 artemisinin을 비롯하여 casticin, chrysosplenol D 등의 flavonoid와 chlorogenic acid 등의 phenolic 화합물을 보고하였으며(Brown, 2010), LPS로 유도된 염증 모델에서 NO 생성 및 염증성 사이토카인 발현을 억제하는 효과를 확인하였다(Abate et al., 2021). 그러나 이러한 항염증 활성의 분자생물학적 기전, 특히 MAPK 신호전달 경로와의 연관성에 대한 연구는 아직 미비한 실정이다.
따라서, 본 연구에서는 RAW264.7 세포를 이용하여 개똥쑥 에탄올 추출물(AE)의 항염증 관련 분자생물학적 기전을 규명하고자 하였다. LPS로 염증을 유도한 후, 세포 생존율, NO 생성, 염증성 유전자(iNOS, COX-2, TNF-α, IL-6, IL-1β)의 mRNA 발현을 분석하였으며, Western blot을 통해 MAPK 경로(p38, ERK 및 JNK)의 인산화 수준을 측정함으로써 AE의 항염증 작용 기전을 분자 수준에서 탐색하여 천연 유래 항염증 소재로써의 활용 가능성을 확장하는 데 기여하고자 한다.
Ⅱ. 재료 및 방법
1. 시료의 제조
본 실험에 사용된 개똥쑥은 (주)엘로힘에서 추출, 분리, 정제한 시료를 구입하여 사용하였다. 건조된 시료에 70% 에탄올을 첨가한 후, 70℃에서 1시간 30분 동안 초음파 분쇄기(sonicator)를 이용하여 추출하였다. 추출액 여과지(whatman No.2)를 사용하여 여과한 후 38℃에서 rotary evaporator로 감압 농축하여 용매를 제거하였다. 농축된 시료는 밀봉하여 냉동 보관하며 실험에 사용하였다. 추출물의 수율은 57.8%로 측정되었다.
2. 세포 생존율 평가
RAW264.7 세포는 한국세포주은행(Korean Cell Line Bank, Seoul, Korea)에서 분양을 받아 사용하였다. 이를 96-well plate에 well당 1×10⁴ cells로 분주하고 24시간 배양한 후 개똥쑥 에탄올 추출물을 12.5, 25, 50, 100, 200, 400 μg/mL 농도로 처리하였다. 24시간 처리 후 EZ-Cytox reagent 10 μL를 각 well에 첨가하여 incubator에서 1~4시간 반응시켰으며, 450 nm에서 흡광도를 측정하였다. 세포 생존율(%)은 무처리군 대비 상대값으로 계산하였다.
3. Nitric oxide(NO) 생성량 측정
개똥쑥 추출물이 LPS로 유도된 RAW264.7 세포의 nitric oxide(NO) 생성에 미치는 영향을 확인하기 위해 Griess assay를 수행하였다. 세포를 분주하고 24시간 배양한 뒤, LPS를 1 μg/mL을 처리하여 염증 반응을 유도하였다. 이후 개똥쑥 에탄올 추출물을 농도별(0, 12.5, 25, 50, 100 μg/mL)로 처리하였다. NO 정량을 위한 nitrite standard는 stock solution(0.1 M)을 DMEM 배지에 희석하여 100 μM로 조정한 후 단계 희석하여 100, 50, 25, 12.5, 6.25 μM 농도의 nitrite solution을 제조하여 작성하였다. NO 생성량을 정량화하기 위해, 세포배양 상등액 100 μL와 Griess reagent(Promega, Madison, WI, USA) 100 μL를 혼합한 뒤 암실 조건에서 10분간 반응시켰으며, 이후 540 nm 파장에서 흡광도를 Bio-Rad Laboratories, Inc. 장비를 이용하여 측정하였다.
4. Quantitative real-time polymerase chain reaction(qRT-PCR)
IL-1β, IL-6, TNF-α 등 염증성 사이토카인과 COX-2, iNOS 등 염증 관련 효소 단백질의 mRNA 발현 수준을 평가하기 위해 qRT-PCR 분석을 수행하였다. 세포를 6-well plate에 well당 5×10⁵ cells가 되도록 분주하여 배양한 후 LPS(1 μg/mL)로 염증을 유도하였다. LPS(1 μg/mL)로 염증을 유도한 뒤, 개똥쑥 추출물을 농도별(12.5, 25, 50, 100, 200 μg/mL)로 처리하였다. Incubator에서 24시간 배양 후 Trizol을 각 well당 1 mL씩 첨가하여 세포를 용해하였다. 이어 chloroform을 첨가하여 원심분리 후 상등액을 회수하고, isopropanol을 이용하여 RNA를 침전시킨 뒤 70% 에탄올로 세척하였다. 추출된 RNA로부터 cDNA를 합성한 후, 유전자별 특이적 primer와 SYBR green qPCR mix를 cDNA에 혼합하여 PCR을 실시하였다. Real-time PCR의 반응 조건은 다음과 같이 설정하였다. Pre-denaturation 단계는 50℃에서 2분, 이어서 95℃에서 15분간 수행하였으며, 증폭 단계에서는 95℃에서 20초 및 60℃에서 40초 조건으로 총 40 cycles를 반복하였다.
5. Western blot
MAPK의 대표적인 단백질인 P38, JNK, ERK 및 염증성 효소 단백질인 COX-2, iNOS의 발현을 확인하기 위하여 세포를 6-well plate에 well당 5×10⁵ cells가 되도록 분주하였다. 추출물을 12.5, 25, 50, 100 μg/mL의 농도로 각각 처리한 뒤 1시간 경과 후 1 μg/mL 농도의 LPS를 추가 처리하였으며, 이후 24시간 동안 incubator 내에서 배양하였다. 배양 완료 후 plate를 PBS로 세척하고, RIPA buffer를 이용하여 세포 내 단백질을 추출하였다. 추출된 단백질의 농도는 Bradford reagent(Sigma-Aldrich Co.)를 활용하여 정량하였으며, 정량된 단백질은 10% SDS-PAGE(Polyacrylamide gel)를 통해 전기영동으로 분리한 후 blocking buffer에서 1시간 동안 blocking을 실시하였다. COX-2, iNOS, p-ERK, ERK, p-p38 및 p38의 단백질 발현 수준을 확인하기 위해 Cell Signaling Technology Inc.에서 제공하는 항체를 사용하였다. 2차 항체로는 anti-rabbit IgG(Cell Signaling Technology Inc.)를 사용하였다. 단백질 발현량을 측정하기 위해 Polyvinylidene difluoride(PVDF) membrane(Bio-Rad, Hercules, CA, USA)에 Exwestlumi-plus(ATTO CO., Tokyo, Japan)를 묻힌 후 ChemiDoc(LuminoGraph, ATTO Co.)로 밴드 사진을 찍었다. 밴드의 정량적 분석은 Image J software(US National Institutes of Health, Bethesda, MD, USA)를 활용하여 수행하였다. COX-2 및 iNOS 단백질의 밴드 정량 시에는 β-actin을 internal standard로 설정하였으며, MAPK에 속하는 단백질의 phospho-form 밴드는 해당 total-form을 internal standard로 적용하였다.
6. 통계분석
모든 실험은 3회 반복 수행하였으며, 통계분석은 IBM SPSS Statistics ver. 29(IBM Corp., Chicago, IL, USA)를 이용하여 실시하였다. 실험 결과는 평균과 표준편차(SD)로 표현하였다. 유의성 분석은 일원배치 분산분석(one-way ANOVA)으로 분석결과를 검증한 후, 집단 간 다중비교는 Tukey's multiple comparison test에 의해 수행하였으며 p<0.05 수준에서 통계적 유의성을 확인하였다.
Ⅲ. 결과 및 고찰
1. Raw 264.7 세포에서 개똥쑥 추출물의 세포 생존율 평가
개똥쑥 추출물(AE)이 RAW264.7 세포의 생존율에 미치는 영향을 확인하기 위하여 MTT assay를 수행하였다. AE는 12.5~200 μg/mL 범위에서 유의한 세포독성이 관찰되지 않음을 확인하였으나, 400 μg/mL 농도에서 AE 무처리군과 비교하여 세포 생존율이 유의하게 감소하는 것을 확인하였다[그림 1]. 따라서 본 실험에서는 세포 독성이 나타나지 않은 200 μg/mL이하의 농도를 사용하였다.
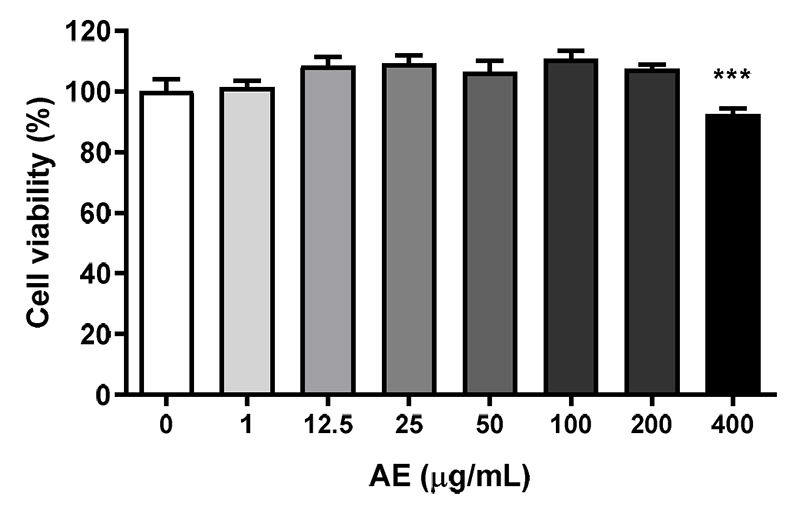
RAW264.7 세포에서 개똥쑥 추출물의 세포 생존율개똥쑥 추출물(AE)의 세포 생존율. 개똥쑥 추출물 무처리군과 비교, 결과는 평균±표준편차로 표시함(n=3), ***p<.001.
2. Raw 264.7 세포에서 개똥쑥 추출물의 nitric oxide(NO) 생성량 측정
과도하게 생성된 nitric oxide(NO)는 세포 내 산화 스트레스를 증가시켜 염증 반응을 유도하고, 지속적인 NO의 축적은 조직 손상 및 DNA 변이를 유발하는 것으로 알려져 있다(김예지 외, 2024). 따라서, RAW 264.7 cell에서 AE가 염증 억제 효과를 나타내는지를 확인하기 위해 LPS로 염증 반응을 유도한 뒤 NO 생성을 측정하였다. 그 결과, LPS 처리군은 무처리군에 비해 NO 생성량이 현저히 증가하여 염증 반응이 유의하게 유도되었음을 확인하였다[그림 2]. 반면, AE를 100 μg/mL 이상 농도로 처리한 군에서는 NO 생성이 유의하게 감소하였다. 이러한 결과는 AE가 LPS에 의해 유도된 NO 생성을 억제함으로써 항염증 활성을 나타낼 수 있음을 시사한다.
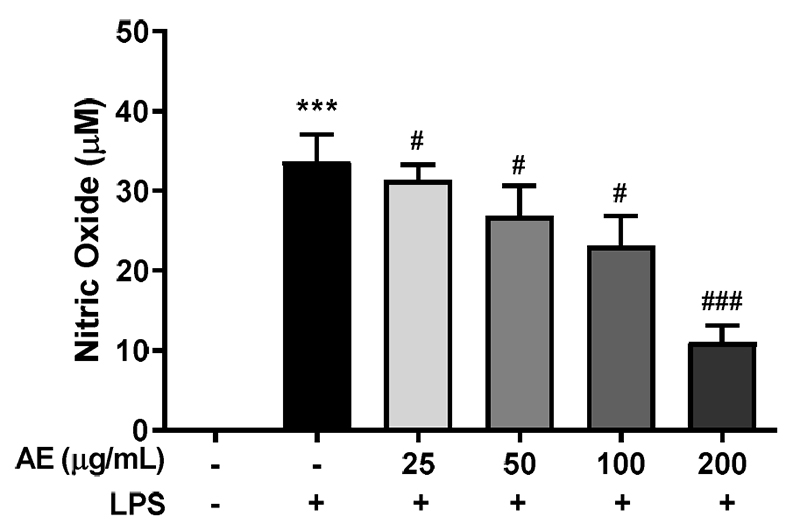
RAW264.7 세포에서 개똥쑥 추출물의 NO 생성량결과는 평균±표준편차로 표시함(n=3), Control과 비교 ***p<0.001, LPS 처리군과 비교, #p<0.05, ###p<0.001.
3. Raw 264.7 세포에서 개똥쑥 추출물의 염증성 사이토카인 생성량 측정
IL-1β, IL-6, TNF-α는 pro-inflammatory cytokine으로, 대식세포의 활성화, 신호전달 증폭, 염증 반응 유지에 중요한 역할을 한다(Qu et al., 2018). iNOS와 COX-2는 염증 반응의 핵심 효소로, 전사 수준의 증가가 NO 및 prostaglandin 증가로 이어져 염증의 증폭을 유도한다(Mollace et al., 2005). 본 연구에서는 AE가 염증성 사이토카인(IL-1β, IL-6, TNF-α)과 염증성 효소 단백질(iNOS, COX-2)의 mRNA 발현에 미치는 영향을 보고자 하였다. LPS로 염증을 유도한 RAW264.7 세포에 AE를 25, 50, 100 μg/mL 농도로 처리한 결과, LPS 단독 처리군에서 모든 유전자의 mRNA 발현 수준이 대조군에 비해 유의적으로 증가함으로써 염증 모델의 유도가 정상적으로 이루어졌음을 확인하였다[그림 3]. AE 처리군에서는 TNF-α, IL-1β 및 COX-2의 mRNA 발현이 농도 의존적인 감소 양상을 나타내었으나 통계적 유의성은 확인되지 않았다. IL-6의 mRNA 발현은 추출물 처리군(25, 50, 100 μg/mL)에서 LPS 단독 처리군 대비 유의적으로 감소하였다. iNOS의 mRNA 발현은 추출물 처리군(25, 50, 100 μg/mL)에서 LPS 단독 처리군 대비 유의적으로 억제되었다(p<0.001). 이는 개똥쑥 추출물이 전사 수준에서 iNOS의 발현을 억제함으로써 NO 과생성을 저해할 수 있음을 시사한다.
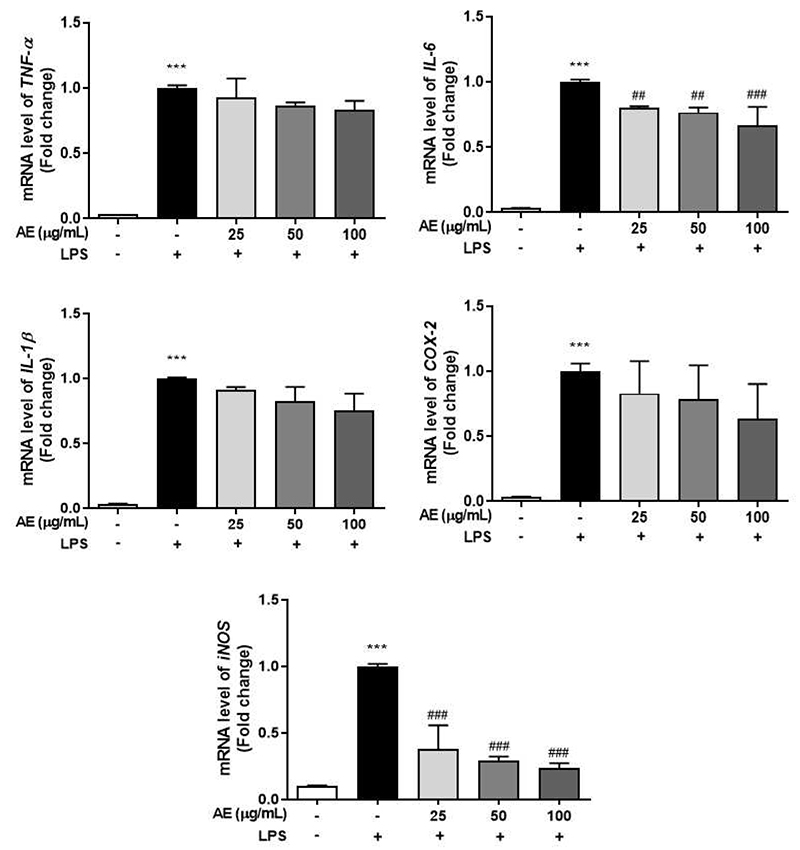
RAW264.7 세포에서 개똥쑥 추출물의 TNF-α, IL-6, IL-1β, COX-2, iNOS 의 mRNA 발현량결과는 평균±표준편차로 표시함(n=3), Control과 비교 ***p<0.001, LPS 처리군과 비교 ##p<0.01, ###p<0.001.
4. Raw 264.7 세포에서 개똥쑥 추출물의 단백질 발현량 측정
MAPK는 세포 외부의 물리적·화학적 자극에 반응하여 순차적인 인산화 과정을 통해 활성화되는 신호전달 단백질군으로, p38, JNK, ERK가 대표적인 구성원에 해당한다(Cowan & Storey, 2003). LPS에 의한 염증 유도가 확인된 조건에서 AE를 25, 50, 100 μg/mL 농도로 처리한 결과, ERK의 인산화 수준은 추출물 농도에 의존적으로 감소하는 경향을 나타내었다[그림 4]. 특히 100 μg/mL 농도에서는 LPS 단독 처리군 대비 유의적으로 억제됨이 확인되었다. p38의 인산화 수준 역시 농도 의존적인 감소 양상을 나타내었으나, 통계적 유의성은 확인되지 않았다. 반면, JNK의 인산화 수준은 추출물 처리 농도에 따라 증가하는 경향을 나타내었다. 이러한 결과는AE가 ERK의 선택적 저해를 통해 항염증 효과를 나타내는 것으로 사료된다.
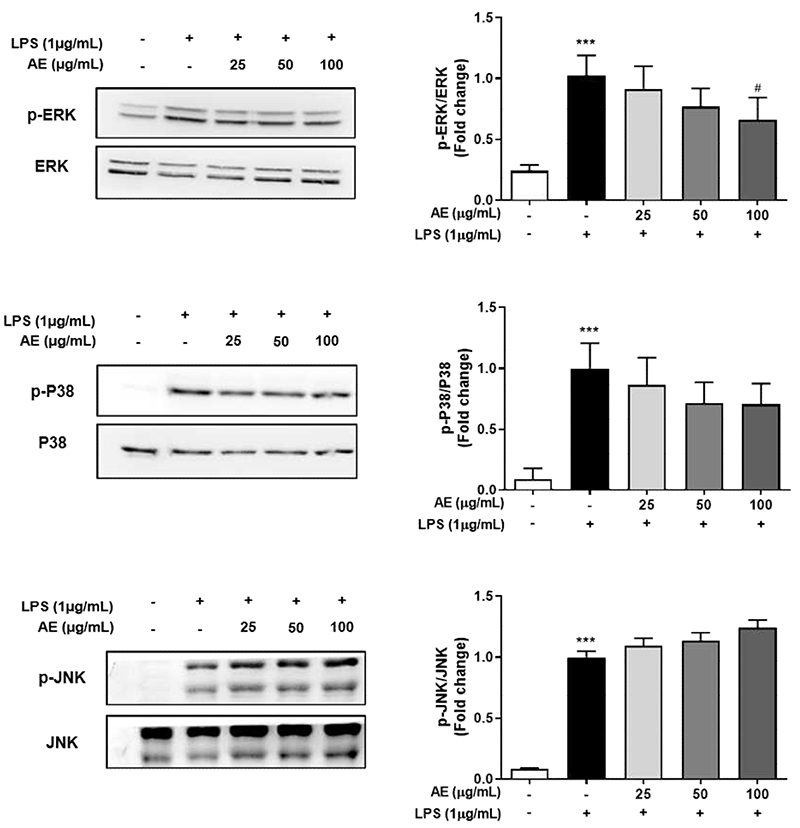
RAW264.7 세포에서 개똥쑥 추출물의 MAPK의 단백질 발현량결과는 평균±표준편차로 표시함(n=3), Control과 비교 ***p<0.001, LPS 처리군과 비교 #p<0.05
iNOS는 염증 신호에 의해 유도 발현되어 세포 독성 수준의 NO를 과생성하며, COX-2는 아라키돈산 대사 경로를 통해 프로스타글란딘의 생합성을 촉매함으로써 염증 반응의 지속 및 악화에 기여하는 것으로 보고되어 있다(Aktan, 2004). 본 연구에서 LPS로 유도된 염증 조건에서 증가한 iNOS 및 COX-2의 단백질 발현은 추출물 처리에 의해 농도 의존적으로 감소하였으며, 100 μg/mL 농도에서 LPS 단독 처리군 대비 통계적으로 유의하게 억제됨이 확인되었다[그림 5]. 특히 iNOS 단백질 발현의 유의적 억제는 NO assay에서 관찰된 NO 생성량의 감소와 일치하는 결과로, AE가 iNOS의 발현을 전사 및 단백질 수준에서 동시에 억제함으로써 NO의 과생성을 저해하는 것으로 사료된다.
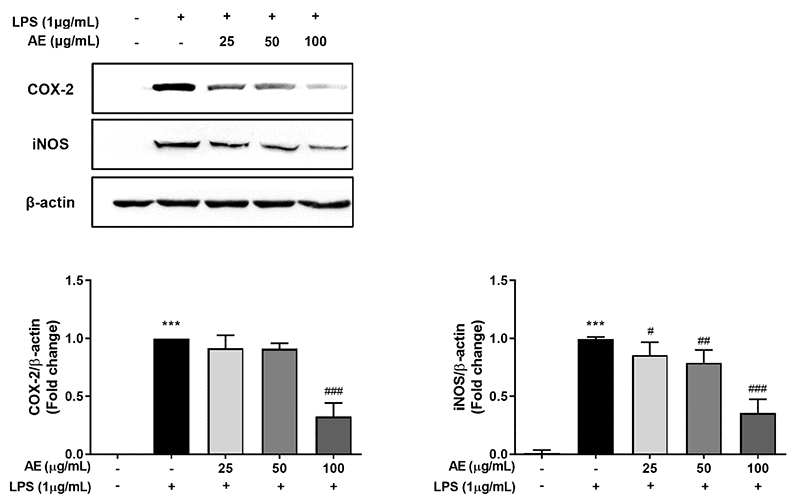
RAW264.7 세포에서 개똥쑥 추출물의 iNOS 및 COX-2의 단백질 발현량결과는 평균±표준편차로 표시함(n=3), Control과 비교 ***p<0.001, LPS 처리군과 비교 #p<0.05, ##p<0.01, ##p<0.001
Ⅳ. 요약 및 결론
본 연구는 개똥쑥 에탄올 추출물(AE)의 항염 효능 및 그 기전을 확인하고, 이를 통해 기능성 천연소재로서의 개발 가능성을 평가하기 위하여 수행되었다. RAW264.7 cell을 이용한 세포실험에서, AE는 200 μg/mL 이하 농도에서 세포독성이 나타나지 않았으며, 따라서 이후 항염 관련 실험에서 이 농도 이하로 처리하였다. LPS로 염증을 유도한 세포에서 추출물 처리 시 NO 생성량이 농도 의존적으로 감소하였고, 특히 100 μg/mL 이상 농도에서 유의한 억제 효과가 관찰되었다. 따라서 NO 생성 억제 효과는 AE가 염증 매개 인자 생성을 억제함으로써 항염증 작용을 동시에 보유하고 있음을 뒷받침한다. 또한 IL-6의 mRNA 발현 수준은 LPS 처리군과 비교하여 통계적으로 유의하게 감소하였으며, IL-1β, TNF-α 및 COX-2는 추출물 농도가 높아질수록 감소하는 경향을 보였으나 통계적 유의성은 확인되지 않았다. Western blot을 통해 단백질 발현 및 세포 내 신호 전달 경로를 분석한 결과, AE는 염증 매개 인자인 iNOS 및 COX-2 단백질의 발현을 농도 의존적으로 유의하게 억제하였다. 특히 MAPK 경로의 변화를 확인하였을 때, AE는 ERK를 효과적으로 억제하였으나 p38 및 JNK의 활성에는 유의한 영향을 미치지 않는 것으로 보였다. 한편, AE의 활성성분에 대한 정량 분석은 본 연구의 범위에 포함하지 않았으며, 이는 추후 HPLC 분석을 통해 보완할 필요가 있다.
이러한 결과를 종합하면, 본 연구의 in vitro 세포 수준 결과는 개똥쑥 추출물의 항염증 활성 가능성을 제시하며, 염증성 질환 예방 및 개선을 위한 기능성 소재 연구의 기초자료로 활용될 수 있음을 시사한다.
REFERENCES
- 김보민, 김근태, 김은지, 임은경, ... 김영민(2016). A549 폐암세포에서 미토콘드리아 경로를 통한 개똥쑥 추출물의 apoptosis 유도 효과. 생명과학회지, 26(8), 887-894.
- 김예지, 이현지, 남유리, 배은영, ... 김경아(2024). RAW264.7 세포에서 열처리한 맥문동 에탄올 추출물의 MAPK 경로 조절을 통한 항염증 효능. 한국생활과학회지, 33(6), 995-1005.
- 류지현, 이수정, 김미주, 신정혜, ... 성낙주(2011). 개똥쑥의 항산화 및 항암활성과 기능성 물질의 탐색. 한국식품영양과학회지, 40(4), 509-516.
- 홍민지, 김민주, 김성문(2021). 개똥쑥(Artemisia annua L.)의 생리 활성. Weed & Turfgrass Science, 10(3), 243-263.
-
Abate, G., Zhang, L., Pucci, M., Morbini, G., ... & Mastinu, A. (2021). Phytochemical analysis and anti-inflammatory activity of different ethanolic phyto-extracts of Artemisia annua L. Biomolecules, 11(7), 975.
[https://doi.org/10.3390/biom11070975]

-
Adhikari, B., Marasini, B. P., Rayamajhee, B., Bhattarai, B. R., ... & Parajuli, N. (2021). Potential roles of medicinal plants for the treatment of viral diseases focusing on COVID-19: A review. Phytotherapy Research, 35(3), 1298-1312.
[https://doi.org/10.1002/ptr.6893]
-
Aktan, F. (2004). iNOS-mediated nitric oxide production and its regulation. Life Sciences, 75(6), 639-653.
[https://doi.org/10.1016/j.lfs.2003.10.042]
-
Brown, G. D. (2010). The biosynthesis of artemisinin (Qinghaosu) and the phytochemistry of Artemisia annua L. (Qinghao). Molecules, 15(11), 7603-7698.
[https://doi.org/10.3390/molecules15117603]
-
Cai, Y., Luo, Q., Sun, M., & Corke, H. (2004). Antioxidant activity and phenolic compounds of 112 traditional Chinese medicinal plants associated with anticancer. Life Sciences, 74(17), 2157-2184.
[https://doi.org/10.1016/j.lfs.2003.09.047]
-
Cowan, K. J., & Storey, K. B. (2003). Mitogen-activated protein kinases: New signaling pathways functioning in cellular responses to environmental stress. Journal of Experimental Biology, 206(7), 1107-1115.
[https://doi.org/10.1242/jeb.00220]
-
Donato, R., Santomauro, F., Bilia, A. R., Flamini, G., & Sacco, C. (2015). Antibacterial activity of Tuscan Artemisia annua essential oil and its major components against some foodborne pathogens. LWT-Food Science and Technology, 64(2), 1251-1254.
[https://doi.org/10.1016/j.lwt.2015.07.014]
-
Efferth, T. (2017). From ancient herb to modern drug: Artemisia annua and artemisinin for cancer therapy. Seminars in Cancer Biology, 46, 65-83.
[https://doi.org/10.1016/j.semcancer.2017.02.009]
-
Haq, F. U., Roman, M., Ahmad, K., Rahman, S. U., ... & Ullah, W. (2020). Artemisia annua: Trials are needed for COVID-19. Phytotherapy Research, 34(10), 2423-2424.
[https://doi.org/10.1002/ptr.6733]
-
Hirayama, D., Iida, T., & Nakase, H. (2018). The phagocytic function of macrophage-enforcing innate immunity and tissue homeostasis. International Journal of Molecular Sciences, 19(1), 92.
[https://doi.org/10.3390/ijms19010092]
- Hong, M. (2024). Intraspecific chemical differences of Korean native sweet wormwood (Artemisia annua L.) and psychophysiological differences by its essential oils of representative chemotypes. 강원대학교 박사학위논문.
-
Hwang, D. I., Won, K.-J., Kim, D.-Y., Yoon, S. W., ... & Lee, H. M. (2016). Anti-adipocyte differentiation activity and chemical composition of essential oil from Artemisia annua. Natural Product Communications, 11(4), 539-542.
[https://doi.org/10.1177/1934578X1601100430]
-
Kyriakis, J. M., & Avruch, J. (2012). Mammalian MAPK signal transduction pathways activated by stress and inflammation: A 10-year update. Physiological Reviews, 92(2), 689-737.
[https://doi.org/10.1152/physrev.00028.2011]
-
Mollace, V., Muscoli, C., Masini, E., Cuzzocrea, S., & Salvemini, D. (2005). Modulation of prostaglandin biosynthesis by nitric oxide and nitric oxide donors. Pharmacological Reviews, 57(2), 217-252.
[https://doi.org/10.1124/pr.57.2.1]
-
Nathan, C. (2002). Points of control in inflammation. Nature, 420, 846-852.
[https://doi.org/10.1038/nature01320]
-
Oh, S.-Y., & Hyun, C.-G. (2025). Anti-inflammatory potential of umckalin through the inhibition of iNOS, COX-2, pro-inflammatory cytokines, and MAPK signaling in LPS-stimulated RAW 264.7 cells. Future Pharmacology, 5(1), 6.
[https://doi.org/10.3390/futurepharmacol5010006]
-
Qu, X., Tang, Y., & Hua, S. (2018). Immunological approaches towards cancer and inflammation: A cross talk. Frontiers in Immunology, 9, 563.
[https://doi.org/10.3389/fimmu.2018.00563]
-
Sugiyama, Y., Hiraiwa, Y., Hagiya, Y., Nakajima, M., ... & Ogura, S.-i. (2018). 5-Aminolevulinic acid regulates the immune response in LPS-stimulated RAW 264.7 macrophages. BMC Immunology, 19(1), 41.
[https://doi.org/10.1186/s12865-018-0277-5]
-
Wang, J., Liu, Y., Guo, Y., Liu, C., ... & Ma, T. (2024). Function and inhibition of P38 MAP kinase signaling: Targeting multiple inflammation diseases. Biochemical Pharmacology, 220, 115973.
[https://doi.org/10.1016/j.bcp.2023.115973]
-
Wang, Y., Wang, K., & Fu, J. (2020). HDAC6 mediates macrophage iNOS expression and excessive nitric oxide production in the blood during endotoxemia. Frontiers in Immunology, 11, 1893.
[https://doi.org/10.3389/fimmu.2020.01893]
- World Health Organization (2006). WHO monograph on good agricultural and collection practices (GACP) for Artemisia annua L. Geneva: World Health Organization.